
Une plante ne peut pas fuir.
Tout ce que cette page raconte découle de cette phrase.
Se défendre sans bouger
Un animal menacé a des options : courir, se cacher, mordre, crier.
Une plante n’en a aucune. Elle est là, à cet endroit précis, pour toute sa vie. Ce qui vient la manger la trouvera.
Ses défenses sont donc d’une autre nature. Elles sont chimiques — substances amères, irritantes, toxiques, indigestes — et mécaniques : épines, poils, écorces, silice dans les feuilles.
Un lien frappant s’en dégage : ce qui défend la plante est souvent ce qui nous soigne, ou ce qui nous empoisonne, selon la dose.
Beaucoup de médicaments dérivent de substances que des plantes fabriquent pour ne pas être mangées. C’est le sujet d’une autre page de ce site.
Une question de formulation
Nous venons d’écrire « pour ne pas être mangées ».
C’est exactement la formulation qu’il ne faut pas employer, et nous l’avons employée à dessein, pour montrer à quel point elle vient d’elle-même.
« Pour » suppose une intention. Il suppose que la plante a un projet. Elle n’en a pas.
Ce site a adopté une règle, expliquée dans notre page sur les défenses animales, et la voici appliquée ici :1
Mauvaise version : cette plante fabrique une substance amère pour ne pas être mangée.
Bonne version : parmi ces plantes, celles qui fabriquaient les substances les plus amères étaient moins broutées, et ont laissé plus de descendants.
Trois mots de plus. Aucune intention prêtée. Le mécanisme dit au lieu d’être nommé.
Vivre ensemble : les trois cas
Le mot symbiose désigne une association durable entre deux espèces différentes. Il ne dit rien, à lui seul, de qui y gagne — et c’est justement là qu’il faut être précis, parce que trois situations très différentes se cachent derrière.
- Le mutualisme : les deux y gagnent. Une abeille récolte du nectar, la fleur se fait transporter son pollen. Aucune des deux ne rend service à l’autre par gentillesse ; chacune y trouve son compte, et c’est ce qui rend l’arrangement stable.
- Le commensalisme : l’une y gagne, l’autre ne perd rien. Une orchidée épiphyte pousse accrochée à un tronc pour atteindre la lumière, sans prélever quoi que ce soit à l’arbre.
- Le parasitisme : l’une y gagne aux dépens de l’autre. Le gui plante ses racines dans les branches d’un arbre et lui prend sa sève.
La plus importante de ces associations est invisible et se joue sous terre. Les racines de la grande majorité des plantes terrestres sont enveloppées de champignons microscopiques : ce sont les mycorhizes. Le champignon, dont les filaments explorent un volume de sol bien supérieur à celui que les racines atteindraient seules, apporte à la plante de l’eau et des minéraux — du phosphore surtout. En échange, la plante lui cède une part des sucres qu’elle fabrique.2
Cette association existe depuis plus de quatre cents millions d’années — on en trouve des structures fossilisées, très semblables aux actuelles, dans des roches d’Écosse — et l’on considère qu’elle a rendu possible la conquête de la terre ferme par les végétaux. Le bois, lui, n’apparaîtra que soixante-dix millions d’années plus tard. Un arbre isolé de ses champignons pousse mal ; la plupart des plantes de la planète ne vivent pas seules, et n’ont jamais vécu seules.3
Une exception, parce qu’elle est instructive. Quelques familles se passent entièrement de mycorhizes, et notamment les choux — chou, brocoli, colza, moutarde — ainsi que les épinards et les betteraves. Elles ont perdu cette association au cours de leur évolution et se débrouillent seules. Une règle qui vaut pour l’immense majorité n’est pas une loi universelle, et il est plus honnête de nommer ceux qui y échappent.4
La frontière, cependant, n’est pas nette. Une même association peut basculer d’une catégorie à l’autre selon les conditions : un champignon qui aide une plante pourrait lui devenir nuisible si la forêt autour dépérit, mais cela reste discuté, et certaines orchidées prennent aux mycorhizes sans jamais rien rendre. Ce ne sont pas trois cases mais un dégradé, et les classer suppose de choisir un seuil — ce que ce site rencontre partout.5
Les associations : la preuve par l’expérience
Certaines plantes ne se défendent pas seules : elles hébergent des animaux qui s’en chargent.
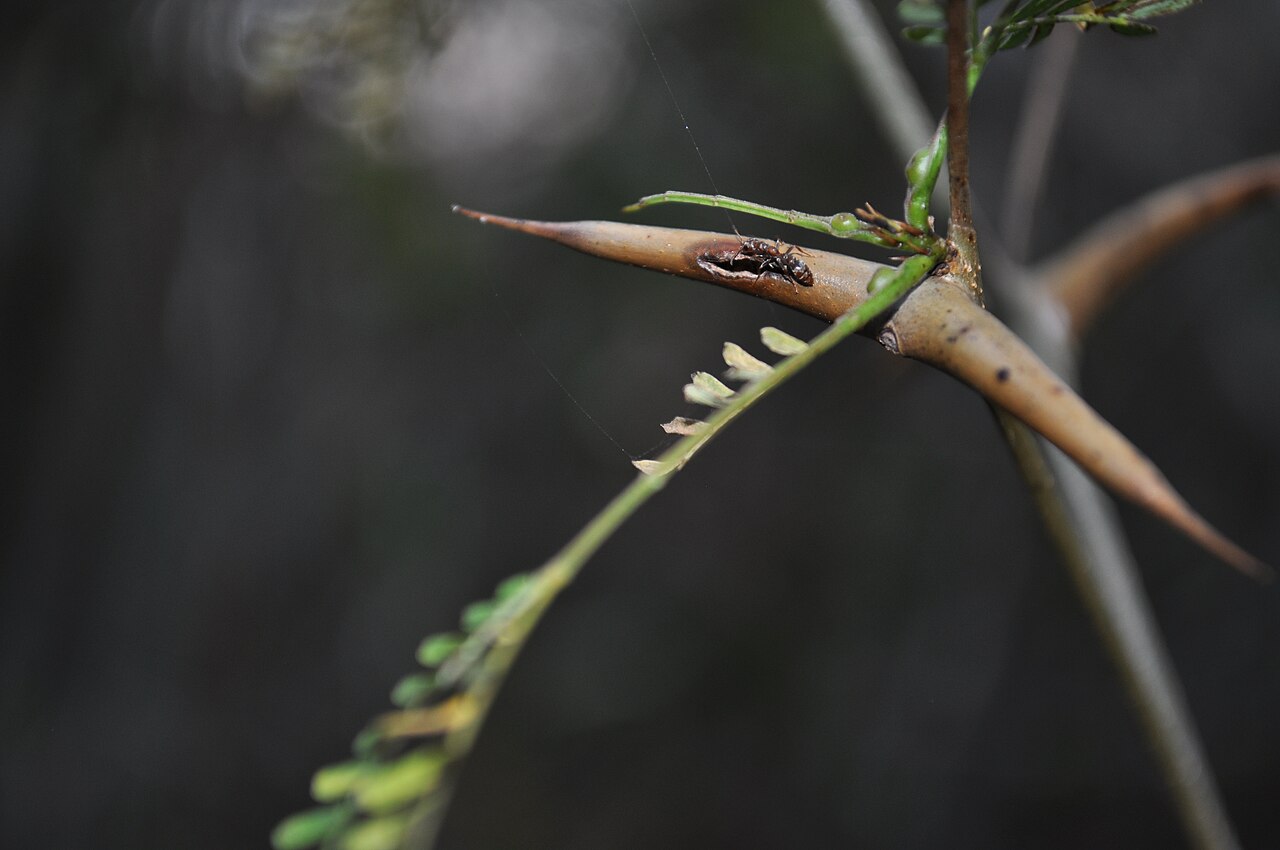
L’exemple le plus documenté est celui de l’acacia Vachellia cornigera et des fourmis du genre Pseudomyrmex. L’arbre offre un logement (des épines creuses) et une nourriture dédiée (des corps beltiens riches en protéines) ; les fourmis patrouillent sans cesse et attaquent les herbivores.
Une expérience historique de Janzen (1966) a permis de vérifier la réalité de cet échange :6
- Dispositif : sur un même site, les chercheurs ont retiré les colonies de fourmis d’un groupe d’acacias, tout en conservant un groupe témoin intact.
- Résultat mesuré : en l’absence de fourmis, la mortalité des arbres a bondi, la croissance des tiges s’est effondrée, et l’attaque par les insectes phytophages a explosé.7
C’est la méthode fondamentale : retirer le partenaire pour vérifier la nature de la relation.
Quand une plante est attaquée, quelque chose part dans l’air
Une chenille commence à manger une feuille de maïs.
La plante émet alors des composés volatils — des molécules odorantes qui se répandent dans l’air. Ces composés attirent des guêpes parasitoïdes, qui pondent leurs œufs dans cette chenille.8
Le résultat est mesurable : la chenille est attaquée à son tour.
Ce qui déclenche l’émission
C’est le point le plus intéressant, et il exclut l’explication la plus simple.
Ce n’est pas la blessure mécanique. Une feuille découpée aux ciseaux ne déclenche pas la même réponse.9
C’est la salive de la chenille. La plante ne réagit pas au fait d’être abîmée : elle réagit à des molécules précises qui lui indiquent par qui elle est abîmée.
Le même mécanisme sous terre
Le signal ne passe pas seulement par l’air : il passe aussi par les racines.
Quand les larves d’un coléoptère ravageur attaquent ses racines, le maïs libère dans le sol une molécule qui attire fortement un ver microscopique, lequel s’attaque à ces larves.10
L’effet de la sélection moderne
En comparant les variétés, les chercheurs ont fait une découverte.
La plupart des lignées de maïs nord-américaines n’émettent plus cette molécule. Les lignées européennes, elles, l’émettent — et l’ancêtre sauvage du maïs aussi.11
C’est ce dernier point qui tranche : si la plante sauvage possède la capacité et que la variété moderne ne l’a plus, elle a bien été perdue en cours de sélection. Les auteurs l’écrivent sans détour.12
Personne ne l’avait supprimée délibérément : on sélectionnait autre chose, et elle a disparu au passage.
La mesure au champ, qui ferme le dossier
On pourrait croire ce mécanisme trop subtil pour compter dans un vrai champ. Deux mesures montrent le contraire.
- Sur une variété qui produit le signal, les larves du ravageur sont infectées par les vers cinq fois plus souvent que sur une variété qui ne le produit pas.
- Si l’on ajoute soi-même la molécule dans le sol, près de la variété muette, le nombre de ravageurs adultes qui en sortent tombe de plus de moitié.13
La seconde expérience mérite attention. Elle ne se contente pas d’observer une différence : elle rétablit le facteur manquant, et vérifie si l’effet revient. Il revient. C’est la preuve la plus solide qu’on puisse donner — on n’a pas seulement constaté la corrélation, on a rallumé la cause.
Une précaution de vocabulaire, qui est stricte
On lit partout que les plantes « communiquent », qu’elles « préviennent leurs voisines », qu’elles « appellent au secours ».
Cette page n’emploiera aucun de ces mots.
Non parce que le phénomène serait douteux — il est mesuré et reproduit. Mais parce que ces mots ajoutent quelque chose que la mesure ne montre pas : une intention.14
Ce qui est établi : une plante attaquée émet des molécules ; ces molécules attirent des insectes ; ces insectes attaquent l’agresseur. Cela suffit largement à être remarquable.
Dire qu’elle « appelle au secours », c’est glisser de ce qui a été mesuré à une histoire qui ressemble à la nôtre. Une fois cette histoire installée, on ne cherche plus le mécanisme : on croit l’avoir.
C’est la troisième fois que ce site rencontre le même problème : avec « instinct » chez les animaux, avec « mémoire » pour le système immunitaire, et ici. À chaque fois, un mot emprunté à la vie humaine qui recouvre un mécanisme au lieu de le décrire.
Une réserve honnête
Les auteurs le signalent eux-mêmes : la plupart de ces démonstrations ont d’abord été faites en laboratoire ou en conditions contrôlées. Ce qui se passe dans un champ, avec du vent, des dizaines d’espèces et des odeurs partout, est plus difficile à établir.15
Le phénomène tient bien quand deux agresseurs attaquent en même temps. Mais entre « cela marche dans nos conditions » et « cela marche partout », il y a un pas que les chercheurs ne franchissent pas — et cette page non plus.
Cela dit, le signal souterrain du maïs, lui, a bien été mesuré en plein champ. Toutes ces recherches ne sont pas au même stade, et il faut le dire aussi.
Ce que nous ne referons pas ici
Le dossier des réseaux souterrains entre arbres est traité dans notre page sur les arbres et la forêt. Nous ne le reprenons pas ici, et ce n’est pas un hasard.
C’est précisément dans une page comme celle-ci — les symbioses, l’entraide, les échanges — que la tentation serait la plus forte de le raconter à nouveau, en un peu plus enthousiaste.
Nous renvoyons. Nous ne refaisons pas.
C’est une règle de fabrication de ce site, et elle sert exactement à cela : empêcher qu’un fait se déforme en circulant à l’intérieur même de l’encyclopédie.
Note 1
La règle de formulation appliquée ici est établie dans l’entrée 5.13, avec ses sources
Note 2
It is estimated that more than 80% of living plant species form symbioses with horizontally-transmitted filamentous fungi […] In return, plants supply their fungal symbionts with carbohydrates fixed from atmospheric carbon dioxide
On estime que plus de 80 % des espèces de plantes vivantes forment des symbioses avec des champignons filamenteux transmis horizontalement […] En retour, les plantes fournissent à leurs champignons symbiotiques des glucides fixés à partir du dioxyde de carbone atmosphérique
Field, Katie J. et al., « Symbiotic Options for the Conquest of Land », Trends in Ecology & Evolution, vol. 30, n° 8, 2015, p. 477-486
Note 3
It is widely thought that symbiotic soil fungi facilitated the colonisation of the terrestrial environment by plants. […] Firstly, the incredibly well preserved early-Devonian Rhynie chert macrofossils show individual vascular plant cells harbouring fungal structures that are strikingly similar to those formed by arbuscular mycorrhizal (AM) fungi of the phylum Glomeromycota within living cells of modern vascular plants [18,19] (see Box 1).
On pense généralement que des champignons symbiotiques du sol ont facilité la colonisation du milieu terrestre par les plantes. […] D’abord, les macrofossiles remarquablement bien conservés du chert de Rhynie, au début du Dévonien, montrent des cellules de plantes vasculaires abritant des structures fongiques étonnamment semblables à celles que forment les champignons mycorhiziens à arbuscules (AM) du phylum Glomeromycota dans les cellules vivantes des plantes vasculaires actuelles [18,19] (voir encadré 1).
Field, Katie J. et al., « Symbiotic Options for the Conquest of Land », Trends in Ecology & Evolution, vol. 30, n° 8, 2015, p. 477-486
The 400 million-year-old Rhynie chert has provided a wealth of information not only of early land plants, but also of the fungi that inhabited this paleoecosystem. […] Collection locality. Rhynie, Aberdeenshire, Scotland. […] Nevertheless, the demonstration that modern appearing endophytes existed at least 400 million years ago provides a critical source of information
Le chert de Rhynie, vieux de 400 millions d’années, a fourni une foule d’informations non seulement sur les premières plantes terrestres, mais aussi sur les champignons qui habitaient cet écosystème ancien. […] Lieu de récolte. Rhynie, Aberdeenshire, Écosse. […] Néanmoins, la démonstration que des endophytes d’apparence moderne existaient il y a au moins 400 millions d’années fournit une source d’information essentielle
Taylor, T. N., Remy, W., Hass, H. et Kerp, H., « Fossil Arbuscular Mycorrhizae from the Early Devonian », Mycologia, vol. 87, n° 4, 1995, p. 560-573
Note 4
Certaines plantes ne mycorhizent jamais et même sont défavorables aux champignons du sol. Les crucifères (brassicacées : colza, choux, moutarde…) et les chénopodiacées (épinard, betterave) sont connues pour être défavorables aux champignons mycorhiziens
Viaux, Philippe, « Interactions sol-plante », Encyclopédie de l’Académie d’agriculture de France, fiche « Questions sur… » n° 01.08.Q06, série « Fertilité des sols agricoles », juin 2024, en accès libre
Besides Brassicales, the AM symbiosis has been lost independently in several lineages of flowering plants [19]. […] We first tested the presence of these genes, either 'conserved' or 'symbiosis-specific', in the genomes of sugar beet and spinach (Beta vulgaris and Spinacia oleracea, Amaranthaceae, Caryophyllales [20]), […] that are all well-characterized non-hosts for AM fungi.
En plus des Brassicales, la symbiose mycorhizienne à arbuscules a été perdue indépendamment dans plusieurs lignées de plantes à fleurs [19]. […] Nous avons d’abord recherché ces gènes, « conservés » ou « spécifiques de la symbiose », dans les génomes de la betterave et de l’épinard (Beta vulgaris et Spinacia oleracea, Amaranthacées, Caryophyllales [20]), […] qui sont tous des non-hôtes bien établis des champignons mycorhiziens à arbuscules.
Delaux, Pierre-Marc et al., « Comparative Phylogenomics Uncovers the Impact of Symbiotic Associations on Host Genome Evolution », PLoS Genetics, vol. 10, n° 7, e1004487, 2014
Note 5
Specifically, Pec et al. concluded that CMNs switch from being a benefit to a detriment to seedlings growing in stands with high tree mortality caused by insect attack. Thus, an alternative explanation is that in stands with high tree mortality, seedlings grown in mesh bags that prevent hyphal ingress were protected from surrounding pathogens, and as a result had higher survival than seedlings with supposed access to a CMN.
Plus précisément, Pec et al. ont conclu que les réseaux mycorhiziens communs passent d’un bénéfice à un préjudice pour les jeunes plants poussant dans des peuplements à forte mortalité d’arbres causée par des attaques d’insectes. Une autre explication est donc que, dans les peuplements à forte mortalité, les jeunes plants cultivés dans des sacs à mailles empêchant l’entrée des hyphes étaient protégés des pathogènes environnants, et survivaient donc mieux que les plants supposés reliés à un réseau.
Karst, Justine, Jones, Melanie D. et Hoeksema, Jason D., « Positive Citation Bias and Overinterpreted Results Lead to Misinformation on Common Mycorrhizal Networks in Forests », Nature Ecology & Evolution, vol. 7, 2023, p. 501-511
Note 6
This system has recently been described in detail in respect to one species of plant, Acacia cornigera L. […] and shown experimentally to be a case of mutualism (Janzen, 1966a). In this species pair, the ant is dependent upon the acacia for food and domicile, and the acacia is dependent upon the ant for protection from phytophagous insects and neighboring plants.
Ce système a récemment été décrit en détail pour une espèce de plante, Acacia cornigera L. […], et il a été montré expérimentalement qu’il s’agit d’un cas de mutualisme (Janzen, 1966a). Dans ce couple d’espèces, la fourmi dépend de l’acacia pour sa nourriture et son logement, et l’acacia dépend de la fourmi pour se protéger des insectes phytophages et des plantes voisines.
Janzen, Daniel H., « Coevolution of Mutualism between Ants and Acacias in Central America », Evolution, vol. 20, n° 3, 1966, p. 249-275, accès payant
Note 7
Janzen selected a population of acacia trees and designated some of them as untreated controls and the others as experimental subjects. To the experimental subjects, he fumigated the trees with insecticide to remove all of the resident ants. […] He found that the control trees with the ants had considerably higher survival rates.
Janzen a choisi une population d’acacias et en a désigné certains comme témoins non traités, les autres comme sujets d’expérience. Il a fumigé les arbres soumis à l’expérience avec un insecticide pour en éliminer toutes les fourmis résidentes. […] Il a constaté que les arbres témoins, avec leurs fourmis, avaient des taux de survie considérablement plus élevés.
Sadava, David et al., Life: The Science of Biology, 11ᵉ éd., Sinauer/Macmillan, 2016, animation 55.1 « Mutualism », script en ligne de l’éditeur
Note 8
Corn seedlings release large amounts of terpenoid volatiles after they have been fed upon by caterpillars. […] Females of the parasitic wasp Cotesia marginiventris (Cresson) learn to take advantage of those plant-produced volatiles to locate hosts when exposed to these volatiles in association with hosts or host by-products.
Les jeunes plants de maïs libèrent de grandes quantités de composés volatils terpéniques après avoir été mangés par des chenilles. […] Les femelles de la guêpe parasitoïde Cotesia marginiventris (Cresson) apprennent à tirer parti de ces composés volatils produits par la plante pour localiser leurs hôtes lorsqu’elles y sont exposées en association avec des hôtes ou des sous-produits d’hôtes.
Turlings, Ted C. J., Tumlinson, James H. et Lewis, W. Joe, « Exploitation of Herbivore-Induced Plant Odors by Host-Seeking Parasitic Wasps », Science, vol. 250, 1990, p. 1251-1253
Note 9
The compound N-(17-hydroxylinolenoyl)-L-glutamine (named here volicitin) was isolated from oral secretions of beet armyworm caterpillars. When applied to damaged leaves of corn seedlings, volicitin induces the seedlings to emit volatile compounds that attract parasitic wasps, natural enemies of the caterpillars. Mechanical damage of the leaves, without application of this compound, did not trigger release of the same blend of volatiles.
Le composé N-(17-hydroxylinolénoyl)-L-glutamine (appelé ici volicitine) a été isolé dans les sécrétions buccales des chenilles de la légionnaire de la betterave. Appliquée sur des feuilles abîmées de jeunes plants de maïs, la volicitine pousse ces plants à émettre des composés volatils qui attirent des guêpes parasites, ennemies naturelles des chenilles. Abîmer les feuilles mécaniquement, sans appliquer ce composé, n’a pas déclenché l’émission du même mélange de composés volatils.
Alborn, Hans T. et al., « An Elicitor of Plant Volatiles from Beet Armyworm Oral Secretion », Science, vol. 276, 1997, p. 945-949
Note 10
Here we report the first identification of an insect-induced belowground plant signal, (E)-β-caryophyllene, which strongly attracts an entomopathogenic nematode. Maize roots release this sesquiterpene in response to feeding by larvae of the beetle Diabrotica virgifera virgifera
Nous rapportons ici la première identification d’un signal végétal souterrain induit par un insecte, le (E)-β-caryophyllène, qui attire fortement un nématode entomopathogène. Les racines du maïs libèrent ce sesquiterpène lorsqu’elles sont mangées par les larves du coléoptère Diabrotica virgifera virgifera
Rasmann, Sergio et al., « Recruitment of Entomopathogenic Nematodes by Insect-Damaged Maize Roots », Nature, vol. 434, 2005, p. 732-737
Note 11
Most North American maize lines do not release (E)-β-caryophyllene, whereas European lines and the wild maize ancestor, teosinte, readily do so in response to D. v. virgifera attack.
La plupart des lignées de maïs nord-américaines ne libèrent pas de (E)-β-caryophyllène, alors que les lignées européennes et l’ancêtre sauvage du maïs, la téosinte, le font volontiers quand D. v. virgifera les attaque.
Rasmann, Sergio et al., « Recruitment of Entomopathogenic Nematodes by Insect-Damaged Maize Roots », Nature, vol. 434, 2005, p. 732-737
Note 12
North American maize lines must have lost the signal during the breeding process.
Les lignées de maïs nord-américaines ont dû perdre ce signal au cours de la sélection.
Rasmann, Sergio et al., « Recruitment of Entomopathogenic Nematodes by Insect-Damaged Maize Roots », Nature, vol. 434, 2005, p. 732-737
Note 13
Field experiments showed a fivefold higher nematode infection rate of D. v. virgifera larvae on a maize variety that produces the signal than on a variety that does not
Des expériences au champ ont montré un taux d’infection des larves de D. v. virgifera par les nématodes cinq fois plus élevé sur une variété de maïs qui produit le signal que sur une variété qui n’en produit pas
Rasmann, Sergio et al., « Recruitment of Entomopathogenic Nematodes by Insect-Damaged Maize Roots », Nature, vol. 434, 2005, p. 732-737
whereas spiking the soil near the latter variety with authentic (E)-β-caryophyllene decreased the emergence of adult D. v. virgifera to less than half
tandis que l’ajout de (E)-β-caryophyllène authentique dans le sol près de cette dernière variété réduisait de plus de moitié l’émergence des D. v. virgifera adultes
Rasmann, Sergio et al., « Recruitment of Entomopathogenic Nematodes by Insect-Damaged Maize Roots », Nature, vol. 434, 2005, p. 732-737
Note 14
Heil, Martin et Karban, Richard, « Explaining Evolution of Plant Communication by Airborne Signals », Trends in Ecology & Evolution, vol. 25, 2010, p. 137-144
Note 15
Most early work was laboratory-based, but recent studies have explored the role of these volatiles in more natural ecological settings and have shown that they can influence the community of insects colonizing plants (Aartsma et al. 2017, 2020; Kaplan 2012).
L’essentiel des premiers travaux a été mené en laboratoire, mais des études récentes ont exploré le rôle de ces composés volatils dans des cadres écologiques plus naturels et ont montré qu’ils peuvent influer sur la communauté d’insectes qui colonisent les plantes (Aartsma et al. 2017, 2020 ; Kaplan 2012).
Frago, Enric et al., « Herbivore-Induced Plant Volatiles, Not Natural Enemies, Mediate a Positive Indirect Interaction between Insect Herbivores », Oecologia, vol. 198, 2022, p. 443-456
Notes et sources
- ↑
Passage la règle de formulation appliquée ici
Source La règle de formulation appliquée ici est établie dans l’entrée 5.13, avec ses sources, règle établie avec ses sources.
Établi dans d’autres fiches, avec leurs sources · vérifié le 9 septembre 2026
- ↑
Passage Les racines de la grande majorité des plantes terrestres sont enveloppées de champignons microscopiques : ce sont les mycorhizes […] la plante lui cède une part des sucres qu’elle fabrique
It is estimated that more than 80% of living plant species form symbioses with horizontally-transmitted filamentous fungi […] In return, plants supply their fungal symbionts with carbohydrates fixed from atmospheric carbon dioxide
Traduction de la rédaction On estime que plus de 80 % des espèces de plantes vivantes forment des symbioses avec des champignons filamenteux transmis horizontalement […] En retour, les plantes fournissent à leurs champignons symbiotiques des glucides fixés à partir du dioxyde de carbone atmosphérique
Source Field, Katie J. et al., « Symbiotic Options for the Conquest of Land », Trends in Ecology & Evolution, vol. 30, n° 8, 2015, p. 477-486, section « The current paradigm ».
Accès libre ouvrir la source · vérifié le 24 octobre 2026
- ↑
Passage on en trouve des structures fossilisées, très semblables aux actuelles, dans des roches d’Écosse — et l’on considère qu’elle a rendu possible la conquête de la terre ferme par les végétaux
It is widely thought that symbiotic soil fungi facilitated the colonisation of the terrestrial environment by plants. […] Firstly, the incredibly well preserved early-Devonian Rhynie chert macrofossils show individual vascular plant cells harbouring fungal structures that are strikingly similar to those formed by arbuscular mycorrhizal (AM) fungi of the phylum Glomeromycota within living cells of modern vascular plants [18,19] (see Box 1).
Traduction de la rédaction On pense généralement que des champignons symbiotiques du sol ont facilité la colonisation du milieu terrestre par les plantes. […] D’abord, les macrofossiles remarquablement bien conservés du chert de Rhynie, au début du Dévonien, montrent des cellules de plantes vasculaires abritant des structures fongiques étonnamment semblables à celles que forment les champignons mycorhiziens à arbuscules (AM) du phylum Glomeromycota dans les cellules vivantes des plantes vasculaires actuelles [18,19] (voir encadré 1).
Source Field, Katie J. et al., « Symbiotic Options for the Conquest of Land », Trends in Ecology & Evolution, vol. 30, n° 8, 2015, p. 477-486, résumé ; manuscrit accepté p. 3, section « The current paradigm ».
Accès libre ouvrir la source · vérifié le 24 octobre 2026
Passage Cette association existe depuis plus de quatre cents millions d’années — on en trouve des structures fossilisées, très semblables aux actuelles, dans des roches d’Écosse
The 400 million-year-old Rhynie chert has provided a wealth of information not only of early land plants, but also of the fungi that inhabited this paleoecosystem. […] Collection locality. Rhynie, Aberdeenshire, Scotland. […] Nevertheless, the demonstration that modern appearing endophytes existed at least 400 million years ago provides a critical source of information
Traduction de la rédaction Le chert de Rhynie, vieux de 400 millions d’années, a fourni une foule d’informations non seulement sur les premières plantes terrestres, mais aussi sur les champignons qui habitaient cet écosystème ancien. […] Lieu de récolte. Rhynie, Aberdeenshire, Écosse. […] Néanmoins, la démonstration que des endophytes d’apparence moderne existaient il y a au moins 400 millions d’années fournit une source d’information essentielle
Source Taylor, T. N., Remy, W., Hass, H. et Kerp, H., « Fossil Arbuscular Mycorrhizae from the Early Devonian », Mycologia, vol. 87, n° 4, 1995, p. 560-573, résumé, p. 560 ; « Taxonomy », p. 561 ; « Discussion », p. 571.
Accès libre ouvrir la source · vérifié le 25 octobre 2026
- ↑
Passage Quelques familles se passent entièrement de mycorhizes, et notamment les choux […] ainsi que les épinards et les betteraves
Certaines plantes ne mycorhizent jamais et même sont défavorables aux champignons du sol. Les crucifères (brassicacées : colza, choux, moutarde…) et les chénopodiacées (épinard, betterave) sont connues pour être défavorables aux champignons mycorhiziens
Source Viaux, Philippe, « Interactions sol-plante », Encyclopédie de l’Académie d’agriculture de France, fiche « Questions sur… » n° 01.08.Q06, série « Fertilité des sols agricoles », juin 2024, en accès libre, p. 2, section « Les champignons ».
Accès libre ouvrir la source · vérifié le 25 octobre 2026
Passage Elles ont perdu cette association au cours de leur évolution et se débrouillent seules.
Besides Brassicales, the AM symbiosis has been lost independently in several lineages of flowering plants [19]. […] We first tested the presence of these genes, either 'conserved' or 'symbiosis-specific', in the genomes of sugar beet and spinach (Beta vulgaris and Spinacia oleracea, Amaranthaceae, Caryophyllales [20]), […] that are all well-characterized non-hosts for AM fungi.
Traduction de la rédaction En plus des Brassicales, la symbiose mycorhizienne à arbuscules a été perdue indépendamment dans plusieurs lignées de plantes à fleurs [19]. […] Nous avons d’abord recherché ces gènes, « conservés » ou « spécifiques de la symbiose », dans les génomes de la betterave et de l’épinard (Beta vulgaris et Spinacia oleracea, Amaranthacées, Caryophyllales [20]), […] qui sont tous des non-hôtes bien établis des champignons mycorhiziens à arbuscules.
Source Delaux, Pierre-Marc et al., « Comparative Phylogenomics Uncovers the Impact of Symbiotic Associations on Host Genome Evolution », PLoS Genetics, vol. 10, n° 7, e1004487, 2014, Results, sous-partie « Convergent loss of ’symbiosis-specific’ genes », début.
Accès libre ouvrir la source · vérifié le 25 octobre 2026
- ↑
Passage un champignon qui aide une plante pourrait lui devenir nuisible si la forêt autour dépérit, mais cela reste discuté
Specifically, Pec et al. concluded that CMNs switch from being a benefit to a detriment to seedlings growing in stands with high tree mortality caused by insect attack. Thus, an alternative explanation is that in stands with high tree mortality, seedlings grown in mesh bags that prevent hyphal ingress were protected from surrounding pathogens, and as a result had higher survival than seedlings with supposed access to a CMN.
Traduction de la rédaction Plus précisément, Pec et al. ont conclu que les réseaux mycorhiziens communs passent d’un bénéfice à un préjudice pour les jeunes plants poussant dans des peuplements à forte mortalité d’arbres causée par des attaques d’insectes. Une autre explication est donc que, dans les peuplements à forte mortalité, les jeunes plants cultivés dans des sacs à mailles empêchant l’entrée des hyphes étaient protégés des pathogènes environnants, et survivaient donc mieux que les plants supposés reliés à un réseau.
Source Karst, Justine, Jones, Melanie D. et Hoeksema, Jason D., « Positive Citation Bias and Overinterpreted Results Lead to Misinformation on Common Mycorrhizal Networks in Forests », Nature Ecology & Evolution, vol. 7, 2023, p. 501-511, section « Resources are transferred through CMNs and increase seedling performance (claim 2) ».
Accès payant · vérifié le 25 octobre 2026
- ↑
Passage Une expérience historique de Janzen (1966) a permis de vérifier la réalité de cet échange
This system has recently been described in detail in respect to one species of plant, Acacia cornigera L. […] and shown experimentally to be a case of mutualism (Janzen, 1966a). In this species pair, the ant is dependent upon the acacia for food and domicile, and the acacia is dependent upon the ant for protection from phytophagous insects and neighboring plants.
Traduction de la rédaction Ce système a récemment été décrit en détail pour une espèce de plante, Acacia cornigera L. […], et il a été montré expérimentalement qu’il s’agit d’un cas de mutualisme (Janzen, 1966a). Dans ce couple d’espèces, la fourmi dépend de l’acacia pour sa nourriture et son logement, et l’acacia dépend de la fourmi pour se protéger des insectes phytophages et des plantes voisines.
Source Janzen, Daniel H., « Coevolution of Mutualism between Ants and Acacias in Central America », Evolution, vol. 20, n° 3, 1966, p. 249-275, accès payant, p. 249, introduction.
Accès payant · vérifié le 9 septembre 2026
- ↑
Passage les chercheurs ont retiré les colonies de fourmis d’un groupe d’acacias, tout en conservant un groupe témoin intact […] la mortalité des arbres a bondi
Janzen selected a population of acacia trees and designated some of them as untreated controls and the others as experimental subjects. To the experimental subjects, he fumigated the trees with insecticide to remove all of the resident ants. […] He found that the control trees with the ants had considerably higher survival rates.
Traduction de la rédaction Janzen a choisi une population d’acacias et en a désigné certains comme témoins non traités, les autres comme sujets d’expérience. Il a fumigé les arbres soumis à l’expérience avec un insecticide pour en éliminer toutes les fourmis résidentes. […] Il a constaté que les arbres témoins, avec leurs fourmis, avaient des taux de survie considérablement plus élevés.
Source Sadava, David et al., Life: The Science of Biology, 11ᵉ éd., Sinauer/Macmillan, 2016, animation 55.1 « Mutualism », script en ligne de l’éditeur, script de l’animation 55.1 (« Mutualism »), 4ᵉ et 5ᵉ paragraphes.
Accès libre ouvrir la source · vérifié le 27 octobre 2026
- ↑
Passage La plante émet alors des composés volatils […] Ces composés attirent des guêpes parasitoïdes
Corn seedlings release large amounts of terpenoid volatiles after they have been fed upon by caterpillars. […] Females of the parasitic wasp Cotesia marginiventris (Cresson) learn to take advantage of those plant-produced volatiles to locate hosts when exposed to these volatiles in association with hosts or host by-products.
Traduction de la rédaction Les jeunes plants de maïs libèrent de grandes quantités de composés volatils terpéniques après avoir été mangés par des chenilles. […] Les femelles de la guêpe parasitoïde Cotesia marginiventris (Cresson) apprennent à tirer parti de ces composés volatils produits par la plante pour localiser leurs hôtes lorsqu’elles y sont exposées en association avec des hôtes ou des sous-produits d’hôtes.
Source Turlings, Ted C. J., Tumlinson, James H. et Lewis, W. Joe, « Exploitation of Herbivore-Induced Plant Odors by Host-Seeking Parasitic Wasps », Science, vol. 250, 1990, p. 1251-1253, résumé.
Accès payant · vérifié le 25 octobre 2026
- ↑
Passage Ce n’est pas la blessure mécanique […] C’est la salive de la chenille.
The compound N-(17-hydroxylinolenoyl)-L-glutamine (named here volicitin) was isolated from oral secretions of beet armyworm caterpillars. When applied to damaged leaves of corn seedlings, volicitin induces the seedlings to emit volatile compounds that attract parasitic wasps, natural enemies of the caterpillars. Mechanical damage of the leaves, without application of this compound, did not trigger release of the same blend of volatiles.
Traduction de la rédaction Le composé N-(17-hydroxylinolénoyl)-L-glutamine (appelé ici volicitine) a été isolé dans les sécrétions buccales des chenilles de la légionnaire de la betterave. Appliquée sur des feuilles abîmées de jeunes plants de maïs, la volicitine pousse ces plants à émettre des composés volatils qui attirent des guêpes parasites, ennemies naturelles des chenilles. Abîmer les feuilles mécaniquement, sans appliquer ce composé, n’a pas déclenché l’émission du même mélange de composés volatils.
Source Alborn, Hans T. et al., « An Elicitor of Plant Volatiles from Beet Armyworm Oral Secretion », Science, vol. 276, 1997, p. 945-949, résumé (trois premières phrases).
Accès payant · vérifié le 25 octobre 2026
- ↑
Passage Quand les larves d’un coléoptère ravageur attaquent ses racines, le maïs libère dans le sol une molécule qui attire fortement un ver microscopique
Here we report the first identification of an insect-induced belowground plant signal, (E)-β-caryophyllene, which strongly attracts an entomopathogenic nematode. Maize roots release this sesquiterpene in response to feeding by larvae of the beetle Diabrotica virgifera virgifera
Traduction de la rédaction Nous rapportons ici la première identification d’un signal végétal souterrain induit par un insecte, le (E)-β-caryophyllène, qui attire fortement un nématode entomopathogène. Les racines du maïs libèrent ce sesquiterpène lorsqu’elles sont mangées par les larves du coléoptère Diabrotica virgifera virgifera
Source Rasmann, Sergio et al., « Recruitment of Entomopathogenic Nematodes by Insect-Damaged Maize Roots », Nature, vol. 434, 2005, p. 732-737, résumé.
Accès payant ouvrir la source · vérifié le 9 septembre 2026
- ↑
Passage La plupart des lignées de maïs nord-américaines n’émettent plus cette molécule. Les lignées européennes, elles, l’émettent — et l’ancêtre sauvage du maïs aussi.
Most North American maize lines do not release (E)-β-caryophyllene, whereas European lines and the wild maize ancestor, teosinte, readily do so in response to D. v. virgifera attack.
Traduction de la rédaction La plupart des lignées de maïs nord-américaines ne libèrent pas de (E)-β-caryophyllène, alors que les lignées européennes et l’ancêtre sauvage du maïs, la téosinte, le font volontiers quand D. v. virgifera les attaque.
Source Rasmann, Sergio et al., « Recruitment of Entomopathogenic Nematodes by Insect-Damaged Maize Roots », Nature, vol. 434, 2005, p. 732-737, résumé.
Accès payant ouvrir la source · vérifié le 9 septembre 2026
- ↑
Passage elle a bien été perdue en cours de sélection
North American maize lines must have lost the signal during the breeding process.
Traduction de la rédaction Les lignées de maïs nord-américaines ont dû perdre ce signal au cours de la sélection.
Source Rasmann, Sergio et al., « Recruitment of Entomopathogenic Nematodes by Insect-Damaged Maize Roots », Nature, vol. 434, 2005, p. 732-737, résumé.
Accès payant ouvrir la source · vérifié le 9 septembre 2026
- ↑
Passage les larves du ravageur sont infectées par les vers cinq fois plus souvent que sur une variété qui ne le produit pas
Field experiments showed a fivefold higher nematode infection rate of D. v. virgifera larvae on a maize variety that produces the signal than on a variety that does not
Traduction de la rédaction Des expériences au champ ont montré un taux d’infection des larves de D. v. virgifera par les nématodes cinq fois plus élevé sur une variété de maïs qui produit le signal que sur une variété qui n’en produit pas
Source Rasmann, Sergio et al., « Recruitment of Entomopathogenic Nematodes by Insect-Damaged Maize Roots », Nature, vol. 434, 2005, p. 732-737, résumé.
Accès payant ouvrir la source · vérifié le 9 septembre 2026
Passage si l’on ajoute soi-même la molécule dans le sol, près de la variété muette, le nombre de ravageurs adultes qui en sortent tombe de plus de moitié
whereas spiking the soil near the latter variety with authentic (E)-β-caryophyllene decreased the emergence of adult D. v. virgifera to less than half
Traduction de la rédaction tandis que l’ajout de (E)-β-caryophyllène authentique dans le sol près de cette dernière variété réduisait de plus de moitié l’émergence des D. v. virgifera adultes
Source Rasmann, Sergio et al., « Recruitment of Entomopathogenic Nematodes by Insect-Damaged Maize Roots », Nature, vol. 434, 2005, p. 732-737, résumé.
Accès payant ouvrir la source · vérifié le 9 septembre 2026
- ↑
Passage ces mots ajoutent quelque chose que la mesure ne montre pas : une intention
Source Heil, Martin et Karban, Richard, « Explaining Evolution of Plant Communication by Airborne Signals », Trends in Ecology & Evolution, vol. 25, 2010, p. 137-144.
Titre en français Expliquer l’évolution de la communication des plantes par des signaux aériens
Accès payant · vérifié le 9 septembre 2026
- ↑
Passage la plupart de ces démonstrations ont d’abord été faites en laboratoire ou en conditions contrôlées
Most early work was laboratory-based, but recent studies have explored the role of these volatiles in more natural ecological settings and have shown that they can influence the community of insects colonizing plants (Aartsma et al. 2017, 2020; Kaplan 2012).
Traduction de la rédaction L’essentiel des premiers travaux a été mené en laboratoire, mais des études récentes ont exploré le rôle de ces composés volatils dans des cadres écologiques plus naturels et ont montré qu’ils peuvent influer sur la communauté d’insectes qui colonisent les plantes (Aartsma et al. 2017, 2020 ; Kaplan 2012).
Source Frago, Enric et al., « Herbivore-Induced Plant Volatiles, Not Natural Enemies, Mediate a Positive Indirect Interaction between Insect Herbivores », Oecologia, vol. 198, 2022, p. 443-456, introduction, 2ᵉ paragraphe (« The last decade has seen… »).
Accès libre ouvrir la source · vérifié le 27 octobre 2026
Pour l’ensemble de la fiche
Passage le gène concerné et son extinction dans la plupart des variétés américaines
The gene encoding TPS23 is active in teosinte species and European maize lines, but decreased transcription in most North American lines resulted in the loss of (E)-β-caryophyllene production.
Traduction de la rédaction Le gène codant TPS23 est actif chez les espèces de téosinte et dans les lignées européennes de maïs, mais une transcription réduite dans la plupart des lignées nord-américaines a entraîné la perte de la production de (E)-β-caryophyllène.
Source Köllner, Tobias G. et al., « A Maize (E)-β-Caryophyllene Synthase Implicated in Indirect Defense Responses against Herbivores Is Not Expressed in Most American Maize Varieties », The Plant Cell, vol. 20, 2008, p. 482-494, résumé (Abstract).
Accès libre ouvrir la source · vérifié le 24 octobre 2026
Références bibliographiques
16
- Alborn, Hans T. et al., « An Elicitor of Plant Volatiles from Beet Armyworm Oral Secretion », Science, vol. 276, 1997, p. 945-949, accès payant (ce n’est pas la blessure mécanique, c’est une molécule de la salive de la chenille).
- Delaux, Pierre-Marc et al., « Comparative Phylogenomics Uncovers the Impact of Symbiotic Associations on Host Genome Evolution », PLoS Genetics, vol. 10, n° 7, e1004487, 2014, en accès libre (la symbiose mycorhizienne perdue au cours de l’évolution par la lignée des choux, les Brassicales, et indépendamment par d’autres lignées, dont celle de la betterave et de l’épinard). https://doi.org/10.1371/journal.pgen.1004487
- Field, Katie J. et al., « Symbiotic Options for the Conquest of Land », Trends in Ecology & Evolution, vol. 30, n° 8, 2015, p. 477-486, en accès libre (l’ancienneté des mycorhizes et la diversité des associations disponibles pour les premières plantes terrestres). https://doi.org/10.1016/j.tree.2015.05.007
- Frago, Enric et al., « Herbivore-Induced Plant Volatiles, Not Natural Enemies, Mediate a Positive Indirect Interaction between Insect Herbivores », Oecologia, vol. 198, 2022, p. 443-456, en accès libre (dépôt de l’université de Wageningen ; les premiers travaux sur les composés volatils induits par les herbivores menés surtout en laboratoire, les études récentes en conditions plus naturelles). https://edepot.wur.nl/563642
- Heil, Martin et Karban, Richard, « Explaining Evolution of Plant Communication by Airborne Signals », Trends in Ecology & Evolution, vol. 25, 2010, p. 137-144, accès payant (pourquoi le vocabulaire de la communication pose problème).
- Janzen, Daniel H., « Coevolution of Mutualism between Ants and Acacias in Central America », Evolution, vol. 20, n° 3, 1966, p. 249-275, accès payant (le mutualisme établi par l’expérience de retrait des fourmis, dont l’article renvoie le détail à « Janzen, 1966a »).
- Janzen, Daniel H., « Interaction of the Bull’s-Horn Acacia (Acacia cornigera L.) with an Ant Inhabitant (Pseudomyrmex ferruginea F. Smith) in Eastern Mexico », The University of Kansas Science Bulletin, vol. 47, n° 6, 1967, p. 315-558, en accès libre (le compte rendu détaillé, annoncé comme « Janzen, 1966a »). https://biodiversitylibrary.org/part/386253
- Karban, Richard, Plant Sensing and Communication, University of Chicago Press, 2015, en bibliothèque (le bilan critique : ce qui est mesuré, ce qui ne l’est pas, et les limites du passage du laboratoire au champ).
- Karst, Justine, Jones, Melanie D. et Hoeksema, Jason D., « Positive Citation Bias and Overinterpreted Results Lead to Misinformation on Common Mycorrhizal Networks in Forests », Nature Ecology & Evolution, vol. 7, 2023, p. 501-511, accès payant (voir l’entrée 6.4).
- Köllner, Tobias G. et al., « A Maize (E)-β-Caryophyllene Synthase Implicated in Indirect Defense Responses against Herbivores Is Not Expressed in Most American Maize Varieties », The Plant Cell, vol. 20, 2008, p. 482-494, en accès libre (le gène concerné et son extinction dans la plupart des variétés américaines).
- Rasmann, Sergio et al., « Recruitment of Entomopathogenic Nematodes by Insect-Damaged Maize Roots », Nature, vol. 434, 2005, p. 732-737, accès payant (le premier signal souterrain identifié ; les lignées nord-américaines qui ne l’émettent plus, contre les lignées européennes et l’ancêtre sauvage ; l’infection cinq fois plus élevée au champ ; l’ajout de la molécule qui réduit de plus de moitié l’émergence des adultes ; la perte attribuée à la sélection). https://doi.org/10.1038/nature03451
- Sadava, David et al., Life: The Science of Biology, 11ᵉ éd., Sinauer/Macmillan, 2016, animation 55.1 « Mutualism », script en ligne de l’éditeur, en accès libre (l’expérience de Janzen : arbres témoins non traités, fourmis retirées des autres à l’insecticide, survie bien plus forte des témoins). https://digfir-published.macmillanusa.com/life_11e_animation/asset/sinauer_life11e_animation_scripts/life11e_5501_mutualism_scr.html
- Taylor, T. N., Remy, W., Hass, H. et Kerp, H., « Fossil Arbuscular Mycorrhizae from the Early Devonian », Mycologia, vol. 87, n° 4, 1995, p. 560-573, en accès libre (les mycorhizes fossiles du chert de Rhynie, en Écosse, vieux de 400 millions d’années). https://kuscholarworks.ku.edu/bitstream/1808/17992/1/Taylor_1995.pdf
- Turlings, Ted C. J., Tumlinson, James H. et Lewis, W. Joe, « Exploitation of Herbivore-Induced Plant Odors by Host-Seeking Parasitic Wasps », Science, vol. 250, 1990, p. 1251-1253, accès payant (les composés volatils du maïs et les guêpes parasitoïdes).
- Viaux, Philippe, « Interactions sol-plante », Encyclopédie de l’Académie d’agriculture de France, fiche « Questions sur… » n° 01.08.Q06, série « Fertilité des sols agricoles », juin 2024, en accès libre (les plantes qui ne forment jamais de mycorhizes : crucifères comme le colza, les choux et la moutarde, chénopodiacées comme l’épinard et la betterave). https://academie-agriculture.fr/sites/default/files/publications/encyclopedie/interactions_sol-plante.pdf
- La règle de formulation appliquée ici est établie dans l’entrée 5.13, avec ses sources.
Une erreur, un doute ? Écrivez-nous.